トンボの生態学
9.成虫のステージと活動 目次

トンボの生態学 9.成虫のステージと活動
はじめに
 身近な昆虫として,一般の方々が思いつくものとして,チョウ,トンボ,セミ,バッタ,ハチ...,などが挙げられると思います.セミやバッタの一部は鳴き声で身近な存在ですが,他はよく目につく昆虫として認識されていると思います.トンボについていえば,卵や幼虫は,それらに興味がある人にとっては,身近な存在に含められると思いますが,そうでない場合,成虫が存在認識の中心に位置づけられているでしょう.

 トンボ成虫を観察し始めると,止まっているトンボ,飛んでいるトンボ,タンデムになっているトンボなどがまず目につきます.そんな成虫の一番の目的は,子孫をつくることであるとすることに,大きな間違いはないといえるでしょう.そして,子孫をつくる行動,もっと正確に言えば,子孫ができるだけ多く育つ確率が高まるような行動 (繁殖成功度を高める行動) が,成虫には進化しているはずです.
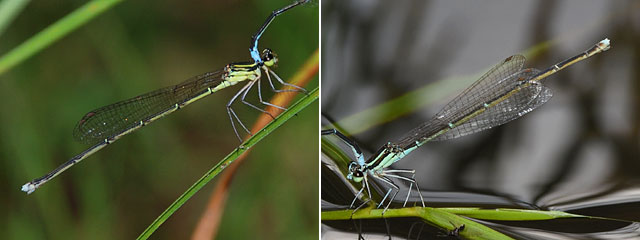
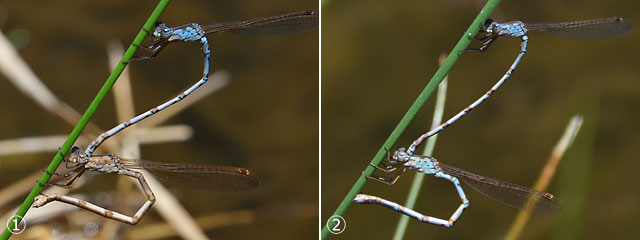
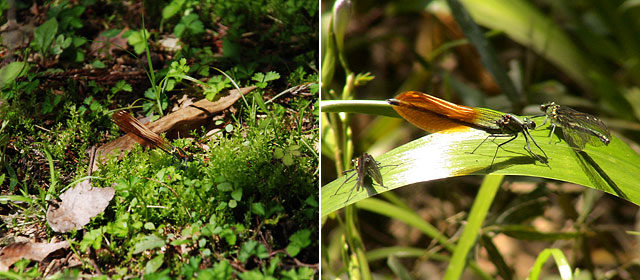
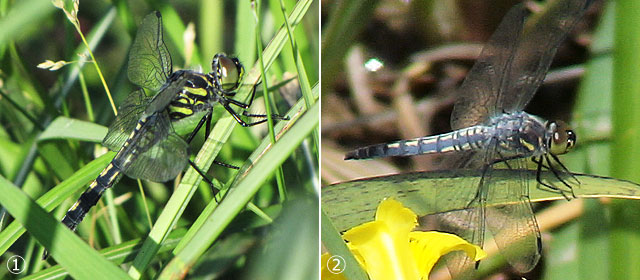
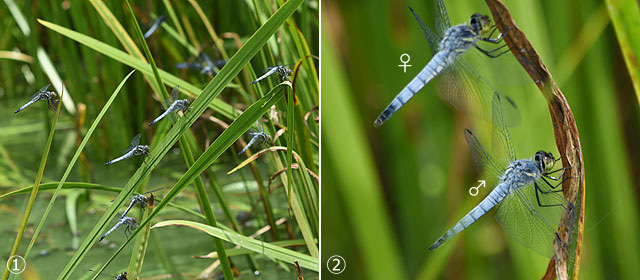
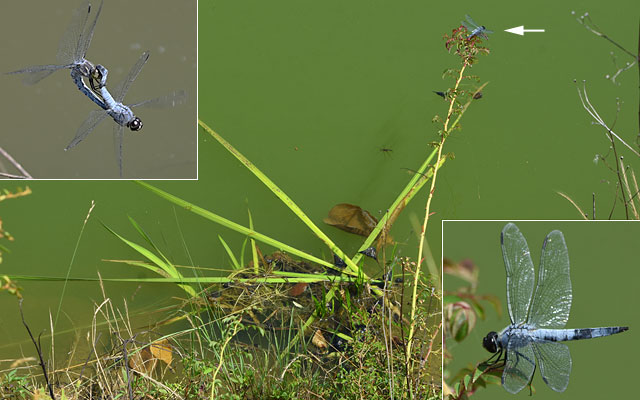
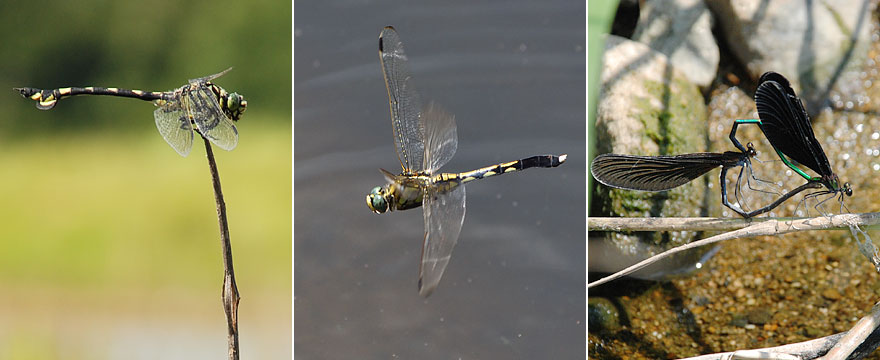
図1.水辺で見かけるトンボたち.あるものは棒の先に止まり,あるものは池の周辺を飛び回り,あるものはリング状になって交尾している.こういった行動はトンボの毎日の生活の上でどのような意味を持っているのだろうか.
 ところで生物であるトンボにとっては,まず生存することが何よりも大切です.それがなければ繁殖することすらままなりません.そこで,成虫の生活を紹介する柱として,生存のための戦略をお話しし,次いで後の節で繁殖にかかるお話を進めたいと思います.繁殖活動のうち,産卵については別の節 (産卵とその行動) でお話ししています.

 生存のために最低限必要なことは,人間なら衣食住となりますが,トンボは服は着ませんから,食と住になります.人間はある程度環境を改変して住みやすい街をつくって,そこで居住します.しかしトンボのような野生動物は,環境改変できないので,食住に適した場所を選んで居住地 (=棲息場所) を決めます.

 まずは生きる基本である餌が十分に摂れる場所,またはその近所を選ぶことが基本になります.また,体温をうまく保つ環境,他の捕食者からねらわれにくい場所などを選ぶことは,生き延びるために重要な要素です.そして繁殖して子孫を残すという成虫の目的を達成するためには,成熟成虫にとって,繁殖に適した水域が相応の距離にあることが必要です.

 トンボの生活史の各ステージのうち,移動できるのは成虫だけであり,その成虫にとって繁殖するのに有利な場所をどのように探しているかは重要な探究テーマになります.これについては別の節 (生息地選択) でお話ししています.この節では,成虫内のステージと体色,さまざまの行動分類,温度などの物理的環境に対する適応的行動,日周活動パターンなどについて述べることにしましょう.


トンボの生態学 9.成虫のステージと活動
成虫内の3つのステージ
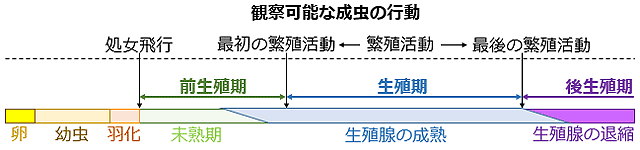
 さて,成虫の生存のための戦略や環境に対する適応について論じるの前に,トンボの3つの成虫ステージを見ておきましょう.それぞれ,前生殖期 prereproductive period,生殖期 reproductive period,後生殖期 postreproductive periodです.

図2.成虫の3つのステージ.前生殖期,生殖期,後生殖期の,行動に基づく操作的定義.野外では,成虫の行動観察を計画的に進めることによって,各ステージを分けることが可能となる.実際の生殖腺の未熟・成熟・退縮は外見からは判断が難しく,かつ連続的な変化なので,これら「観察可能な成虫の行動」に基づいて3つの各ステージを定義するのが現実的である.

�T.後生殖期

 後生殖期は,繁殖期を終えた成虫の時期を指しています*1.Corbet (1962) は,この時期にある成虫について,「体色はくすんで,生殖腺が退縮し,繁殖場所への来訪が途絶える」という特徴があると述べています.そしてタイリクアカネ原名亜種の例を挙げています.しかしこの定義に見合う観察例は,実際のところなかなかありません.特に「生殖腺の退縮」は後生殖期を特徴づける重要な要素ではありますが,これは外観からは判断ができません.いきおい,成虫のシーズン末期に「体色がくすんで,繁殖場所以外で生活している個体」がいれば,後生殖期の個体であると判断することになってしまいます (図3,4).

図3.後生殖期らしい例 (チョウトンボ♂).2006.9.23,11:55.
チョウトンボの出現時期終盤の晴天の日,ふつうなら池で活動する時間帯であるが,水域から離れ,キトンボの未熟個体に混じって草むらで過ごしている.いちおう「体色がくすんで,繁殖場所以外で生活している個体」ではある.
図4.後生殖期らしい例 (シオヤトンボ♀).2013.6.23,9:13.
4月上旬から出現するシオヤトンボにとっては,かなり遅い時期の個体である.草刈りした植物に止まっている.「体色がくすんで,繁殖場所以外で生活している個体」である.
 Ubukata (1981) はカラカネトンボの卵から成虫に至るまでの生存曲線を導き出す野外研究において,「調査池に成虫が最後に訪れた後から翌年の羽化時期までの間に,池の周辺では成虫が全く見つからなかった」と記しており,「繁殖場所以外で生活している個体」がいなかったことから,事実上,後生殖期を過ごす個体はなかったと結論しています.

 一方で,かなり老熟していると思われる個体が生殖活動を行っているという観察例は,それなりに見られます (図5).

図5.シーズン末期まで繁殖活動を続けている例 (オツネントンボ).2024.5.30,12:55.
兵庫県では越冬オツネントンボの出現時期はだいたい6月上旬までだが (東・青木,2025),その時期ぎりぎりまで繁殖活動をしている.
 次にコノシメトンボの観察例を示しておきましょう.兵庫県ではコノシメトンボは多くが11月中に姿を消しますが,一部は12月20日前後までその姿を見ることができます (東・青木,2025).図6は2013年12月5日に観察したもので,交尾態になっているペアを見つけました.このペアは,交尾後,産卵を始めましたが,すぐに別のオスに追い立てられ,沖の方に逃げて産卵を続けました.その後産卵を終え,放されたメスが岸の方に飛んで帰ろうとしたときでした.突然,ポタリと,このメスが水面に落ちてしまいました.コノシメトンボは,打水時にかなり深く腹部を水中に差し込みますので,体が冷えたのかも知れません.この日の10時ごろの外気温は6℃でしたから.

 つまりこのメスは,後生殖期を迎えることなく絶命してしまうところでした (というのは見かねた私が救助したからです.放っておけば絶命したことは間違いありません).時期的にはもう成虫出現期も終わりに近いはずですから,このメスは後生殖期 (それがあるとして) を迎える直前に生殖期を終えたことになります.こういう事例は結構多くあるのではないでしょうか.
図6.生殖期の終了とともに絶命するはずだったコノシメトンボのメス.2013.12.5. 12:28.
 こういう最期の行動を直接見たわけではありませんが,そう推定させるような観察もあります.図7はオニヤンマとキトンボの死骸です.

 オニヤンマの方は8月21日の観察で,樹林に囲まれた細流で,私が歩いてコシボソヤンマを探していたときでした.この場所を通り過ぎ,上流へ50mほど行って引き返したときに見つけました.つまりその間に絶命したようです.コシボソヤンマの飛ぶ細流はオニヤンマも飛びますので,飛んでいた,あるいは産卵していたオニヤンマが突然絶命したものと思われます.

 キトンボの方は12月29日の観察で,まだ現にそれなりの数が繁殖活動が行われている池岸で見つけたものです.普通こういった死骸はアリの餌になってすぐになくなってしまうと思われますが,とにかく気温が低いので残ったと思われます.これも場所から考えて,繁殖活動を行っていた個体が,低温のためなのか理由は分かりませんが,その場で死亡したようです.

図7.左はオニヤンマの自然死.まだ複眼が緑色に輝いており,絶命直後であることが分かる.オニヤンマ成虫はこのように地面に止まることはまずない.右はキトンボの自然死.この場所は当日もキトンボたちが繁殖活動を行っていた場所である.いずれの個体も生殖期を終える前に,事故などではなく自然に死亡したと思われる.
 さらに,生殖期にあるトンボが,捕食されたり,事故で死亡したりする例は枚挙にいとまがありません.このあたりの写真は,概論の最後の方をご覧ください.

 以上のように,後生殖期というのは概念上成り立つステージではありますが,実態上は事例数は少なく,その存在をはっきりとさせるのが難しいステージということができましょう.


�U.前生殖期

 前生殖期は,羽化を処女飛行に飛び立つ時点までとした場合,処女飛行に飛び立ったときに始まって,初めて生殖活動を行ったところまでを指す語と,本サイトでは定義しています (図2).性的に成熟して生殖活動が可能であっても,実際にその個体が生殖活動を初めて行うまでは前生殖期と呼ぶということです*2.そうしないと,実際上の問題として,前生殖期を「通常の観察」によって客観的に決定できないからです.また類義語に「未熟期」あるいは「成熟期」というのがありますが,これらは,性的な成熟の有無を含意していますので,「未熟」の終わりの時期は,必ずしも初めて生殖活動を行う時期と一致しない場合もあると考えられます (つまり性的に成熟していても何らかの理由で繁殖活動を始められない).

 また前生殖期に含まれる一つのステージを表す語にテネラル teneral というのがあります.Corbet (1999) は,羽化直後の成虫で,「その外皮がまだほとんど色がついていなくて白っぽく柔らかい状態にあり,飛び方も弱々しくひらひらとしている」状態の時期としています.そして通常「このような状態は羽化後24時間に満たないのがふつうである」とも述べています (図8).
図8.テネラルな成虫.左はアジアイトトンボで,まだ未熟な時期に見られる橙色になっていない.右はマユタテアカネで,体全体が白っぽく着色が不十分である.
 テネラルな時期は明らかに性的に未熟です.しかしやがて外皮も硬くなり,体色もはっきりしてきます.この時期の体色が生殖活動を行っている成熟個体と大きく異なっているトンボがいます.数が多いのはイトトンボ上科とトンボ科です.オスの変化が大きいものとメスの変化が大きいものがあります.また体に青白粉 pruinescence をふいて見かけが大きく異なるものも,ここでは体色という語に含めて議論します*3.

 少し話がそれますが,この青白粉 (色素) は生殖腺の成熟過程で生じる中胚葉由来の色素であって,皮下細胞 (真皮細胞と思われる) に取り込まれた後,クチクラの微細な孔からクチクラ表面に排出されると,Tillyard (1917) は述べています.また彼は,時にこの色素はクチクラの下にある赤色色素と組み合わさって,(コフキショウジョウトンボのオスのように) 体全体が紫色を帯びて見えることがあるとも書いています.また青白粉は,紫外線を反射する機能があるということです (Robertson, 1984).

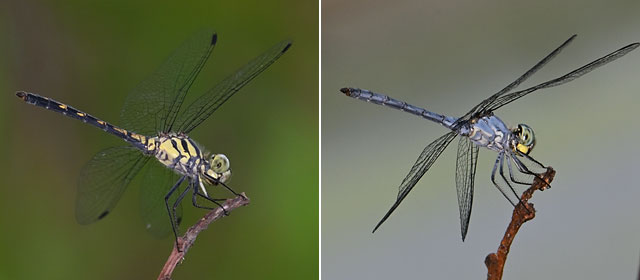
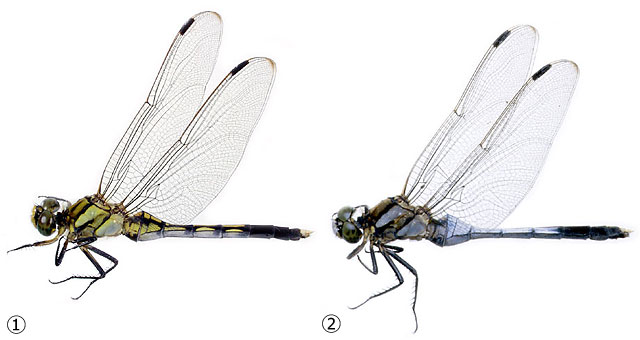
図9.未熟な時期 (左) と繁殖活動を行っている時期 (右) の体色の違い (1) オスが変化.
モノサシトンボ科,アマミルリモントンボ.淡色部の黄色が水色に変化する.
図10.未熟な時期 (左) と繁殖活動を行っている時期 (右) の体色の違い (2) メスが変化.
イトトンボ科,ヒヌマイトトンボ.淡色部の橙色がウグイス色に変化する.
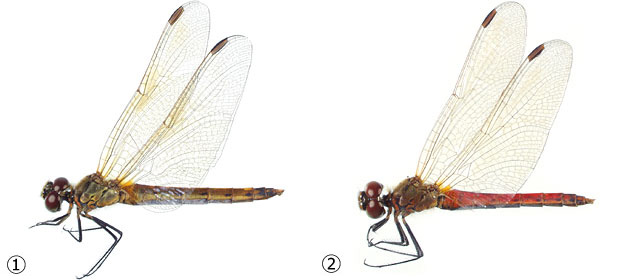
図11.未熟な時期 (左) と繁殖活動を行っている時期 (右) の体色の違い (3) オスが変化.
トンボ科,マユタテアカネ.腹部の黄色が赤色に変化する.
 これらの体色の変化は,個体が未熟か成熟しているかの区別に使われることが多いのですが,体色が変化したからといって繁殖活動をすぐに始めるわけではありません.その例として図12に同じ日に撮影したナニワトンボを掲げました.7月14日という日付は,通常ナニワトンボが繁殖活動を始める時期ではありません.だいたい9月に入ってから始まります.アカネ属のトンボにこういった例がよく見られます.例えば図11のマユタテアカネでは,8月にはもう腹部が赤くなっています (欄外図13).

図12.未熟な時期 (左) としばらくしたあとの時期 (右) の体色の違い (4) オスが変化.
トンボ科,ナニワトンボ.黄色と黒の斑紋が粉をふいて青灰色に変化する.これらは同じ日,2025年7月14日に撮影している.
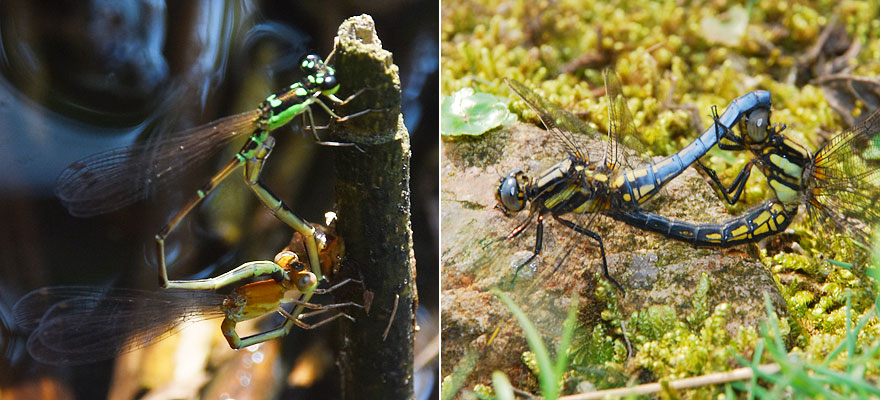
 一方,未熟な体色でありながら交尾をしている観察例があって,これも体色が必ずしも性的成熟と一致しているわけではないということを物語っているのかもしれません.ただし,未熟な体色をしているのがメスの場合,オスの強引な行動によって性的に未熟でありながら交尾状態になっているのかもしれません (図14左).オスの方が未熟な体色の場合は,オスがメスを捕まえようという動機から見て,そういうことはないでしょう (図14右).一方未熟な体色で産卵するメスを私は見た記憶がありません.
図14.未熟な色彩で交尾を行っている例.左のヒヌマイトトンボは,メスがまだ橙色の未熟な体色である.右のシオヤトンボは,オスがまだ完全に青灰色の粉をふいていないが,すでに交尾を行っている.
 つまり,成熟していることを判断する「最初の繁殖活動 (図2)」として,メスの場合は「産卵」を用いるのがよいと考えます.一方で,オスの場合に「交尾」とできないのは,性的に成熟していても,メスとの出会いがなければ交尾に至れないからです.オスの場合は,繁殖水域に現れること,あるいはなわばりを形成する (なわばり防衛行動が見られる) など,種の行動様式に合わせて基準を定義する必要があると思います.

 さらにやっかいな問題があります.夏に生殖休眠 (上田,1993) して,長期間繁殖活動を始めないトンボの存在です*4.国内では,アカネ属やアオイトトンボ属など,初夏に羽化して秋に繁殖活動を始めるトンボが該当します.Uéda (1989) は,アオイトトンボを使った研究で,「卵巣の成熟は8月中旬まで遅れるが,精子の形成は遅延しない」と述べています.つまりここでの卵巣の成熟や精子形成を性腺の成熟とするならば,それらと繁殖活動開始時期の間に大きなずれが存在することになります.これは,性腺が成熟しても繁殖活動を抑制する何らかの機構が存在することを示唆しています.同様の議論は,成虫で越冬する種についても成り立つでしょう.

 これらを考えると,結局のところ前生殖期と生殖期の境界をどうするかについては,生殖腺の成熟の有無,体色の変化,行動の変化等をもとに,研究目的によってきちんと定義して使い分ける必要があるように思います.本サイトでは,トンボの一般的な観察事実からの議論が基本なので,特に断りのない限り,オスについては,原則として,初めて繁殖水域に出現したとき,メスについては初めて産卵を行ったときを生殖期の始まりと操作的に定義して話を進めています (図2).


�V.生殖期

 生殖期における最重要の目的は繁殖活動を行うことです.繁殖活動や繁殖戦略については別の節で扱うので,ここでは生殖期に観察される色彩多型 polychromatism についてまとめておきましょう.その他の適応行動に関しては,次の項で扱います.

 前生殖期と生殖期で色彩が変化する例があることは上述しました.ここで扱うのは,成熟した同種のトンボにおける,同性間の色彩多型です.青白粉をまとうトンボについてもここに含めて考えますが,これには多型 polymorphism という語をあてます.日本産で色彩多型が見られるトンボは,カワトンボ科,モノサシトンボ科,イトトンボ科,ヤンマ科,トンボ科などです.このカテゴリーに入れてよいかどうか迷うところですが,サナエトンボ科やアオイトトンボ科にもそのように見える例があります.まず,日本産のトンボについていくつかの実例を紹介しましょう.

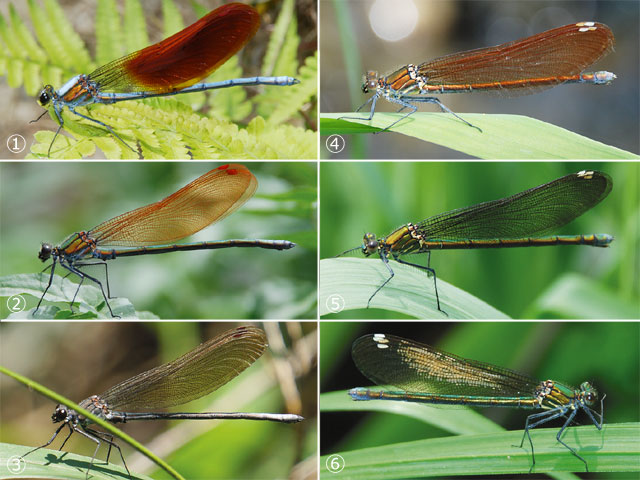
 カワトンボ科では,カワトンボ属 Genus Mnais の2種,ニホンカワトンボとアサヒナカワトンボに,翅色の多型が知られています.これらは,オスとメス両方に見られる点が特徴的です.ここではニホンカワトンボについて例示しておきましょう.

図15.ニホンカワトンボの翅色の色彩多型.左の列がオス,右の列がメス.
① ♂, forma nawai ② ♂, f. sahoi ③ ♂, f. kadowakii ④ ♀, f. nawai ⑤ ♀, f. taketoi ⑥ ♀, 白濁斑の出ている個体.
 モノサシトンボ科では,リュウキュウルリモントンボや,その亜種のアマミルリモントンボのメスに,青色をしたオスと同色型のメスが見られます (尾園ら,2022).また,モノサシトンボのメスにも,水色をしたオス型メスが存在します (図15).

図16.モノサシトンボメスの色彩多型現象.
① ♀, 異色型. ② ♀, オスと同色型.
 イトトンボ科では,キイトトンボ,エゾイトトンボ,アオナガイトトンボ,クロイトトンボ,ヒヌマイトトンボ,ルリイトトンボ,アオモンイトトンボ,マンシュウイトトンボ,アジアイトトンボ,その他多くに見られます.これらはすべてメスが多型を示します.ここではアオモンイトトンボについて例示しておきましょう.

図17.アオモンイトトンボメスの色彩多型現象.
① ♀, 異色型. ② ♀, オスと同色型. ③ ♀, オスと同色系統だが色調が異なる.
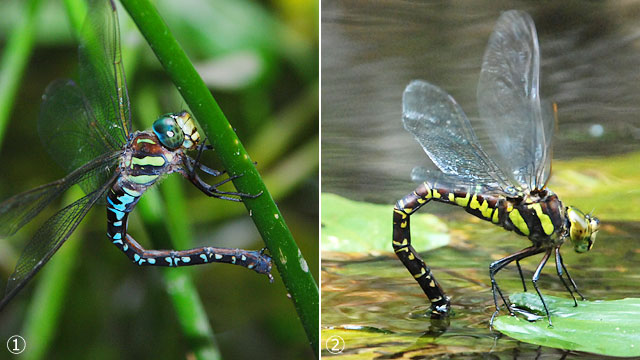
 ヤンマ科では,ルリボシヤンマ属,ギンヤンマ属のいくつかの種に色彩多型が見られます.オオルリボシヤンマのメスの多型現象を例示しておきます.同じ「ルリボシヤンマ属の Aeshna cyanea,ルリボシヤンマなどでは,終齢幼虫や羽化した成虫を数週間それぞれ16℃および30℃に置いて飼育したところ,高温下に置かれた成虫は青色型に,低温下に置かれた成虫は異色型になった (Sternberg, 1995)」という報告があります. ただしイイジマルリボシヤンマはそうならなかったそうです.オオルリボシヤンマではどうでしょう.兵庫県での観察では,標高の高い (つまり低温の) 山中の池で緑色異色型のメスがよく見られるような気がします.

図18.オオルリボシヤンマメスの色彩多型現象.
① ♀, 腹部の淡色斑が水色でオスと同色型. ② ♀, 腹部の淡色斑が黄緑色で異色型.
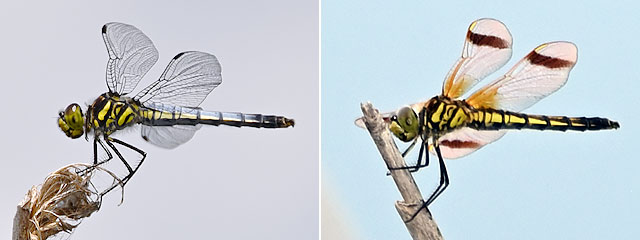
 トンボ科ではコフキトンボが代表的でしょう.これは青白粉をふく・ふかないの多型もありますが,それ以外に翅色が色彩多型を示します.むしろこちらの方が顕著でしょう.シオカラトンボのメスにも多型が見られます.大多数のメスは,いわゆるムギワラトンボと呼ばれる,褐色系の色彩でオスのように青白粉はふきませんが,稀に青白粉をふくオスと同色型の個体が見られます.アカネ属には,メスの腹部が赤くなる個体と褐色の個体の両方が出現することが多いです.

図19.コフキトンボメスの翅色の色彩多型現象および体色の多型現象.
① ♀, 通常のオスとよく似た白粉をふく型. ② ♀, オスと異色型,帯トンボ型.f. disper
図20.シオカラトンボメスの多型現象.
① ♀, 大多数のメスの色彩. ② ♀, オスと同色型,オスと同じように青白粉をふいている.
図21.タイリクアキアカネメスの色彩多型.
① ♀, 腹部が褐色をしたメス. ② ♀, 腹部が赤化したメス.いわばオスと同色型.
 以上,調べてみると,メスに色彩多型が多いのが分かります (Corbet, 1999も参照).オスに色彩多型があるのは,カワトンボ属の例がほぼ唯一でしょう.前生殖期から生殖期にかけて体色が変化するトンボにはオスが多いのと対照的です.これら色彩多型が個体群に維持されている理由については,例えばアサヒナカワトンボのオスが,翅の色彩の違いによって異なる繁殖戦略をとっている (東ら,1987),といったことが知られています.これについては,繁殖戦略の節でお話しする予定です.また体色が温度によって可逆的に変化する例が知られていますが,これについては,尾園ら (2012) に,ホソミオツネントンボでは,「体色が変化する途中段階では温度によって可逆的に色が変わる」という記述があります.

 最後に一つ疑わしい,しかし調べてみる必要がある,サナエトンボ科の例を見ておきましょう.コサナエ属の成熟した (産卵を行っている) メスに,淡色部が薄緑色のものと黄色のものが,同時期に見られるのです (図22).

図22.オグマサナエメスの色彩多型現象?.撮影日はいずれも繁殖活動のさかんな時期である.
① ♀, 淡色部が鮮やかな黄色.2022年5月5日. ② ♀, 淡色部が薄緑色.2015年5月2日.
 羽化した後しばらくは,オスもメスも淡色部はすべて黄色です.オスでは,繁殖活動を行っている個体は淡色部が薄緑色に変化します.しかしメスには,図19のように,産卵を行っている時期にも薄緑色になる個体と黄色のままの個体がいます.この黄色の個体もやがて薄緑色になるのかどうかというのが論点です.

 同じコサナエ属のフタスジサナエでも同様の違いが見られますが,出現末期に見られる個体には薄緑色のものが多いように感じます.反対に同じコサナエ属のタベサナエでは,黄色のメスがほとんどです.そしてこれらいずれも,黄色から薄緑に変わっていきつつあるのかと思われるような個体が存在します.

図23.フタスジサナエメスの色彩多型現象?.
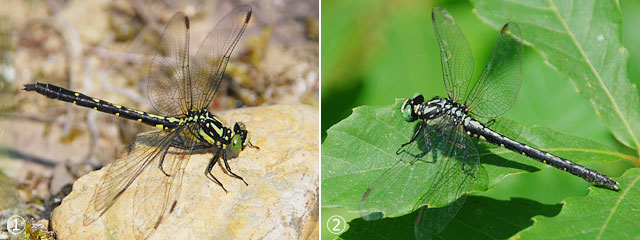
① ♀, 淡色部が黄色. ② ♀, 淡色部が薄緑色. いずれも,2012年5月19日 (フタスジサナエの繁殖活動後半時期) に同じ場所で撮影.
 似たような例は,ホソミオツネントンボでも見られます.越冬後の春に産卵する個体を見ていると,越冬中の前生殖期のままの褐色メス,および水色に変化したメスが産卵しているのを,同じ日に同じ場所で観察できます.

図24.ホソミオツネントンボメスの色彩多型現象?.
① ♀, 全体が前生殖期と同様の褐色. ② ♀, 全体が水色に変化. いずれも,2024年4月7日 (ホソミオツネントンボの繁殖活動開始時期) に同じ場所で撮影.
 さてこの,前生殖期と大きく変わらない体色のまま産卵しているものと,体色が変化して産卵しているものが混在する問題,ここでは指摘はしておきますが,決着は留保しておきたいと思います.単純に体色変化が何らかの要因によって遅れているだけという可能性も含めて,事態が証明されるのを期待したいと思います.


トンボの生態学 9.成虫のステージと活動
成虫が見せるさまざまの行動
 前生殖期と生殖期の間で,トンボの行動に変化が見られるかという点に関しては,繁殖活動を除けば,あまりはっきりと認識されたものはないようです.一般的に,この2つの時期で大きく異なるのは生活場所の違いでしょう.

 前生殖期にあるトンボは水域から離れた場所で生活していることが多いようです.もちろん,繁殖活動を行う水域からほとんど移動しない種もあって,一般化はできません.しかしそういった種でも,未熟な時期は,隠れるように生活しているように見えます.テネラルな時期も含めて未熟な時期のトンボは,飛び方もゆるやかで,捕食の対象になりやすいと考えられます.したがって,目立たないように隠れて生活しているのでしょう.

図25.羽化した繁殖水域である川から離れて,小さな林の中で過ごす未熟なニホンカワトンボ.オス・メス入り交じって過ごしている.
 そんな中で興味深いのがコフキトンボです.コフキトンボは,一生羽化した水域から大きく離れずに,せいぜい羽化直後に池周辺の草地に移動して生活するトンボです.羽化直後にはまだ身体に青白粉をふいていませんが,非常に短期間で青白粉で腹部がおおわれ始めます (図26).これが短期間なのは,粉をふいていない成虫をほとんど見ないことから明らかでしょう.

図26.青白粉をふき始める時期の成虫は,池周囲の草地で過ごしていることが多い.
① ♂, 羽化直後と思われる個体.2009.5.30. ② ♂, わずかに青白粉をふき始めた個体.2007.5.26.
 そして日齢を重ね,体にしっかりと青白粉をふいた前生殖期では,池の中でオスもメスも混じった集団で,しばらく生活します (図27①).この時期のオスは,まだ複眼が黒くなく,メスとよく似た,背面が茶色で腹面が緑褐色をしています (図27②).

図27.前生殖期にあるコフキトンボは,オスとメスが入り交じって池畔で過ごす.2020.6.29.
① 集団で過ごす前生殖期のコフキトンボ. ② その時期のオスの複眼の色.まだ黒くない.
 生殖期を迎えると,複眼が真っ黒になり腹部に黒いシミのようなものが出て,なわばりを形成し,繁殖活動を行います.前生殖期の時期を,さまざまなトンボが生活している池で過ごしている点で,捕食される危険性が高くなりそうですが,幼魚が群れて生活しているのと似たような効果があるのかもしれません.実際,集団で止まっているところを通り過ぎると,四方八方へ飛び,逃げ去ります.捕食者は一瞬どれをねらうか迷うことでしょう.

図28.生殖期に入ったオスはやがて複眼が真っ黒になり,単独生活し,なわばりを形成する.水面に浮かぶ葉が産卵基質で,葉上に着いている褐色の粒が卵である.2020.6.29. 交尾は2022.7.1. すべて同じ池.
 以上,前生殖期と生殖期における行動の変化について,コフキトンボの例をお話ししました.次に,成虫のステージによらず,成虫が見せる行動を分類することを考えてみましょう.成虫はどんな行動をしているか,日頃の観察の中で見られる動き (動かないことも含めて) を列挙し,カテゴリー分けをしてみましょう.その際,カテゴリーを分ける基準が必要ですが,その行動が持つ生活上の機能 (意味といってもよい) をもとにしてみたいと思います.

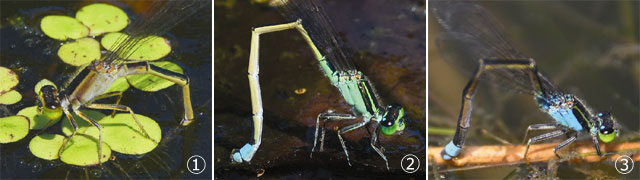
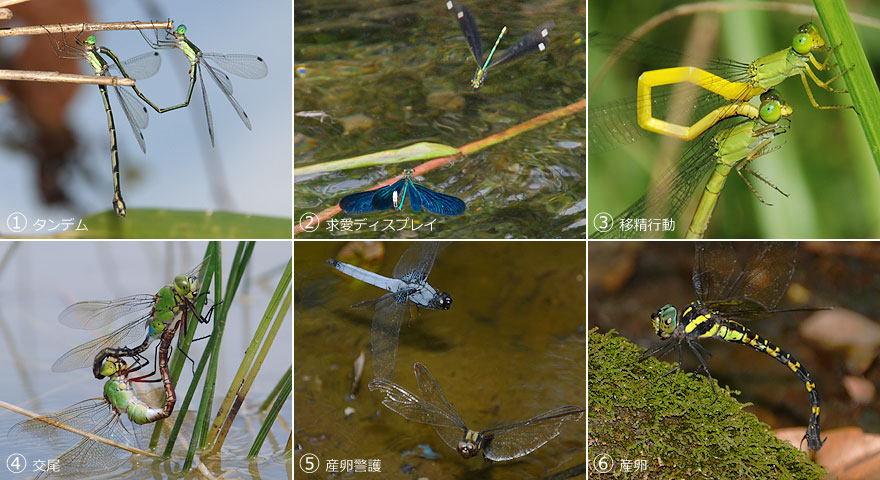
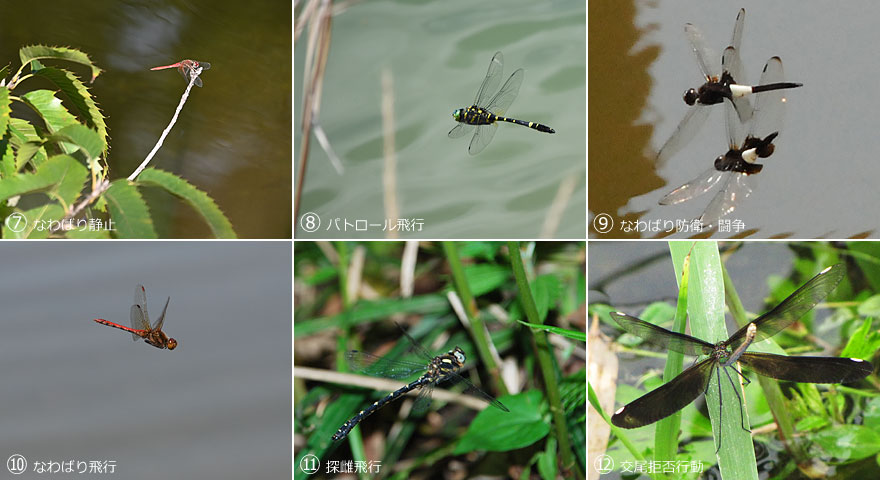
 生殖機能を有する行動から考えてみましょう.ざっと思いつくだけでも,タンデム,求愛ディスプレイ,移精行動,交尾,産卵警護,産卵,なわばり静止,パトロール飛行,なわばり防衛・闘争,なわばり飛行,探雌飛行,メスの交尾拒否行動等々が挙げられます.さまざまのものがありますが,トンボ観察者にとって興味深いものばかりですので,言葉より写真でまとめておきましょう.

図29.トンボの生殖機能に関わる行動例 (1).
① タンデム;オオアオイトトンボは,秋の午後,タンデム状態でしばらく過ごす. ② 求愛ディスプレイ;アオハダトンボは,オスが腹部先端を上にそらし腹部下面の白色部を誇示し,水面に浮かんでメスに求愛する.上を飛ぶのが反応しているメス. ③ 移精行動;キイトトンボが,交尾を始める前に精巣から副性器に精子を移送している. ④ 交尾:ギンヤンマの交尾. ⑤ 産卵警護;オオシオカラトンボのオスは,産卵するメスのすぐ近くを飛んで警護する. ⑥ 産卵:ヤブヤンマの産卵.
図30.トンボの生殖機能に関わる行動例 (2).
⑦ なわばり静止;スナアカネは,飛来した池で,池に突き出た棒の先に止まってなわばりを形成する.パーチャーと呼ばれる. ⑧ パトロール飛行;オオヤマトンボは,池の周囲を周回するように飛行してメスを探す.フライヤーと呼ばれる. ⑨ なわばり防衛・闘争;コシアキトンボが,なわばりに侵入した他のオスを攻撃している. ⑩ なわばり飛行;パーチャーであるタイリクアカネがときどき飛んで周囲を調べる飛行,あるいは狭い範囲を飛ぶフライヤーがなわばりを巡回する飛行. ⑪ 探雌飛行;ムカシトンボが産卵しそうな植物を覗くようにしてメスを探す飛行. ⑫ 交尾拒否行動;メスが近づいてくるオスに対して,翅を広げて腹部を突き出して,交尾する状態でないことを伝える行動.
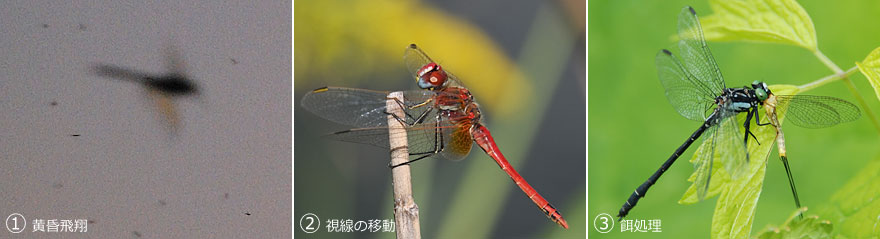
 次に採餌機能を有する行動を考えてみましょう.一つは餌を捕まえる行動で,いわゆるヤンマの黄昏飛翔はその最たるものでしょう.アオモンイトトンボなどが,葉や茎をつつくような行動を見せるときがありますが,これも餌を捕獲する行動です.また,餌を確認するために,首を傾げて上空を見るといった視線の移動も,捕獲前行動として,この機能を有すると考えられます.そして捕まえた餌を食する行動も餌処理の一つとして採餌機能の重要な要素になります.これ以外にも,餌動物をつかむ行動なども含まれるでしょう.
図31.トンボの採餌機能に関わる行動例.
① 黄昏飛翔;ギンヤンマの黄昏飛翔.フォーカスを,手前を飛ぶ蚊柱に合わせて撮影した. ② 視線の移動;おそらく上空を飛ぶ何かを確認するために,スナアカネのオスが体と顔を上の方に向ける姿勢をとった. ③ 餌の咀嚼;ヒラサナエが捕らえたアミメカゲロウを咀嚼している.
 次は体温調節の機能を有する行動です.トンボは変温動物ですから,活動的になるためにはある程度体温を上げる必要があります.また逆に体温が高くなりすぎると,活動しにくくなりひどい場合は死に至るかもしれません.そういう意味で,体温調節にかかる行動は,トンボの毎日の生活にとって重要な意味があると考えられます.まず観察可能な行動から見ていきましょう.

 外気温が高すぎる場合,最も単純な行動として,外気温の低い場所に移動する,あるいはそういう場所で活動するということが考えられます.コバネアオイトトンボは10月から11月にかけて活動するトンボですが,最近の気温上昇のせいか,10月の日向のマコモ群落での活動が朝に集中しており,正午ごろになるとそこから姿をほとんど消してしまうという現象を経験しています.かつては,日当たりのよい正午ごろにさかんに産卵活動を行っていました.

 また夏に活動するヤンマの類には,昼間は林の中で過ごし,朝夕に開けた明るい場所へ出てきて摂食活動や繁殖活動をするものがあります.これは体温の大きな変化を防ぐために場所や活動時間帯を選んでいると見ることができます.

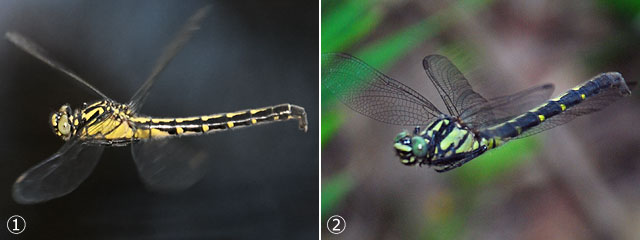
図32.夏のヤンマ,① マルタンヤンマは,一番気温が高くなる昼下がり,林の中で過ごしている.2022.8.8, 13:16.②そして夕方に産卵活動を行う.2009.8.1, 16:05.
 よく知られている体温調節の姿勢として,腹部挙上姿勢 (オベリスク姿勢) があります.Corbet (1962) は,「高温下では,(特に熱帯のパーチャーにおいて) 数多くの種が腹部先端を太陽の方向を指すように向ける傾向がある」と述べており,May (1976) は,「トンボの腹部を持ち上げる姿勢には複数の役割がある可能性があるものの,輻射熱の負荷を軽減する効果は明らに存在する」と述べています.

 私などはどうしても「太陽の方向を指す」という点に興味を持ってしまいますが,May (1976) には,実験的にランプでトンボの体温を上昇させると腹部挙上姿勢を行うことが記されており,むしろ体温上昇との関係の方が重要なのかもしれません.その際彼は,腹部の向きより翅の位置に注目しています.

図33.アオサナエの腹部挙上姿勢と通常の制止姿勢との比較.翅の位置に注目.① 通常の静止姿勢では,翅は屋根型になって,先が下の方に向いている.② 腹部挙上姿勢では翅の先が水平よりやや上に向いている.
 図33の①では,屋根型の翅が胸部を包むように位置することになり,小さなガラス温室のようになって,胸部体温を維持あるいは上昇させることになります.一方腹部挙上姿勢の②では,翅が胸部を包むことはなく,放熱しやすい姿勢であるということになります.さらに太陽放射を受ける面積を少なくして体温上昇を小さくしている可能性もあります.この両者を適当に使い分けることによって,体温を調節することができます.

 この翅を広げて,物体に密着するようにして止まることが,体温上昇あるいは保持に関係している傍証として,エゾトンボ科やヤンマ科の静止姿勢があります.兵庫県などの暖かい地域では,通常これらのトンボは懸垂姿勢で静止します.しかし,北方に分布するカラカネトンボやマダラヤンマは,トンボ科がするように,物体に貼りつくように翅を横に広げて水平に近い姿勢で止まります.日向に止まっているときの影の位置から,太陽の光をいっぱい受けていることが分かります (図34).

図34.南西日本では通常懸垂姿勢で静止するエゾトンボ科やヤンマ科でも,北方に分布する種の中には翅を広げて物体に密着するようにして止まる種がいる.① エゾトンボ科,カラカネトンボ.北海道.② ヤンマ科,マダラヤンマ.長野県.
 日向で静止するトンボの中に,腹部挙上姿勢とは反対に,腹部を下げる姿勢 (このサイトでは腹部下垂姿勢と呼ぶ) をとるものがいます.コフキトンボやハネビロトンボ,その他で見られます.ハネビロトンボやウスバキトンボでは,静止中だけでなく,飛翔中にもこの腹部下垂姿勢が見られます (図35②).腹部下垂姿勢は,May (1976) にも体温調節の機能を有するものとして紹介されています.

図35.腹部下垂姿勢.① コフキトンボ.翅の位置に注目すると,やはり水平より高くなって胸部が大きく露出されている.② ハネビロトンボ.ときどき羽ばたくが,滑翔を交えて飛んでいる.
 さてこれ以外に体温を下げる行動としては,水浴があります.オナガサナエは真夏の日中に日向に出てきて停止飛翔産卵を行うことがあります.このときの水平な姿勢 (図37①のサムネイル写真) は太陽の光を背面から全身に受けますから,大量の輻射熱を受け取ることになるでしょう.また停止飛翔運動 (ホバリング) の羽ばたきは,飛翔筋から大量の熱を発生させ,体温の上昇を招くでしょう.こんな事情からか,通常多くのメスは早朝や夕方に産卵にやって来ることが多いのです.これは上記の時間を選んだ体温調節行動といえるでしょう.

 しかし日差しが強くなり,気温が上昇してきたときの産卵では,産卵が終わった後に水浴を行う姿がよく観察されます (図37①動画).これは体に付いた水分が蒸発する際の気化熱によって体温を下げる行動 (気化冷却) だと考えられています (Corbet, 1999).
図37①:産卵を終えた後水浴するオナガサナエのメス.1/2倍速.
 ②:気温が低いとき翅を震わせてから飛ぶキトンボのオス.
 一方で,外気温が低い場合に,体温を上げる行動にはどのようなものがあるでしょうか.一番ふつうに見られるのが,日光浴です.観察しやすいのは,冬に現れるキトンボでしょう.1月にもなると,気温が一桁になる日も珍しくなく,寒さに強いキトンボでも体温維持のための努力を惜しむわけにはいきません.

図38.キトンボの日光浴.①メス:2020.1.1., 10:57. ②産卵中の休息:2019.1.8., 11:54. 真冬の1月の午前,キトンボたちは池の畔で日光浴をして体温を保持しようとしている.
 直射日光が当たる池の岸辺で,体の平面が太陽光線と直角になるように,わざと石の斜面や垂直な石組みに止まっています (図38).体を石に密着させ,太陽の輻射熱を利用して.体を温めているようです.さらに翅を屋根型にはりつくように石に密着させ,胸部を被っています.翅の基部は黄色く色づいて長波長の光を選択的に通すようになっていて,ひょっとしたら赤外線もよく通すのかもしれません.この部分で胸部と腹部第2節くらいまでを被って温室的な小空間をつくり,それらの部位を効率的に温めているのでしょう.

 日光浴はかなり効果的なようで,実際に測定した結果では,気温が7℃ぐらいの時でも,石表面に温度計を置くとすぐに14℃になりました.日光浴を長時間行うと十分活動できる体温になるのでしょう.逆に日が陰ると飛び立てなくなることも見ています.こういった季節には,さらに積極的に体温を上昇させるため,翅を小刻みに震わせて熱を発生させる動作が見られることがあります (図37②動画).

 ここでキトンボの翅基部の色についての推測を述べましたが,考えてみると,翅の基部に色が付いているトンボは結構いるのです.コシアキトンボやオオシオカラトンボなどは顕著に黒い部分が広がっています.その最たるものはチョウトンボでしょう.これらは暑い季節の日中に活動するトンボたちですが,この基部の黒色で胸部から腹部にかけて陰をつくって体温の上昇を防いでいると思われます (図39).

 さらに翅の黒い部分は多くの場合後翅に広がっています.ハネビロトンボなどはその典型でしょう (図39①).これはちょうど腹部1〜3節あたりを被うようになっており,オスの副性器が存在するあたりです.移精したあとの精子を熱からまもる役割があるのかもしれません.
図39.トンボの翅の基部の着彩は,体温調節に関係しているかもしれない.
① ヒメハネビロトンボのオス;特に後翅の基部が褐色である. ② コシアキトンボのオス;翅の基部には黒色部が広がっている. ③ チョウトンボのオス;腹部挙上姿勢をしているが,金属光沢を持った黒い翅が胸部に陰をつくっている.
 以上述べた体温調節の方法以外に,行動からは見えない内温性の体温調節というものがあります (Corbet, 1999).例えばヒトの場合,暑くなってくると静脈や毛細血管を拡張させて温かくなった血液を皮膚近くに循環させ,皮膚からの放熱を増大させて体温を下げるしくみがあります.トンボの体内には開放血管系が存在し,血リンパが循環しています.飛行中に胸部飛翔筋によって発生した熱を,これを循環させて,飛行中熱を発生しない腹部から,体表や気門 (Miller, 1962) を通して放熱するといったことを,特にフライヤーはやっていると考えられています.

 以上,体温調節はトンボの活動力に直接関係することであり,身近に観察するだけでも,トンボたちはさまざまな戦略を持っていることが分かります.体温調節以外にもまださまざまな行動がありますので,ざっと見ていくことにしましょう.

 カワトンボ科では,ウイング・クラッピング wing clapping と呼ばれる,翅を開いては閉じる行動が知られています (図40).アオハダトンボのウイング・クラッピングについては,求愛ディスプレイ時に頻繁に見られるので,コミュニケーション機能を有しているように見えます.一方で,特に他個体のいない場面でも見られ,日当たりのよい場所で飛んで止まったときによく行われるので,冷却効果があるのではないかと考える研究や,空気を動かして呼吸を助ける働きがあるのではないかといった研究が紹介されています (Corbet, 1999).カワトンボ科以外では,ホソミオツネントンボなどでも観察したことがあります.

図40①:アオハダトンボのウイング・クラッピング.マウスカーソルを画像の上に置くとアニメーションが始まります.
②:ニホンカワトンボのウイング・クラッピング.マウスカーソルを画像の上に置くとアニメーションが始まります.
 早春に現れるオツネントンボや晩秋に現れるアカネ属のトンボには,自身の体色が隠蔽色 cryptic coloration となるように,自分の体色とよく似たものに止まる行動が見られます (図41).早春や晩秋は,日射が突然雲で遮られるなど,急激な体温低下でトンボが動けなくなる可能性がある季節で,捕食者から逃れるために隠蔽的行動をとることには,暑い季節のトンボに比べてより重要な意味があると考えられます.

図41①:オツネントンボの隠蔽色.早春に草地に止まるオツネントンボのオス.枯れ草に紛れている.2024.3.11.
②:オオキトンボの隠蔽色.老熟する晩秋になると,体色が茶色になり,茶色い枯れ葉によく止まるようになる.2018.12.8.
 その他にも,アオイトトンボ科やイトトンボ科などに見られる腹部を上下動させる行動 abdomen bobbing や (図42①動画),多くのトンボに見られる体の清掃行動 cleaning (図42②動画) などがよく観察されます.腹部の上下動の機能は,なわばり宣言に関係しているらしいという考えが紹介されています (Corbet, 1999).
図42①:ホソミオツネントンボオスの腹部を上下に振る行動.
 ②:ヒヌマイトトンボのメスが翅や産卵管を清掃している行動.

トンボの生態学 9.成虫のステージと活動
トンボ成虫の日周活動パターン
 トンボの日周活動は,さまざまな要因によって影響を受けます.一つが日齢です.前生殖期,生殖期,後生殖期それぞれで,成虫の日周活動パターンが異なることは十分予想されます.また日々の要因として天候状態が成虫の行動に大きく影響を与えることは,観察者にとって経験的に明らかです.また性別によって日周活動パターンが異なることも間違いありません.その他広域分布種であれば,棲息場所の緯度や標高によって日周活動パターンが異なってくることは十分に考えられます.

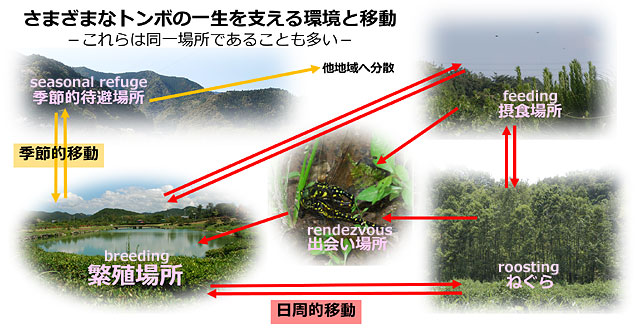
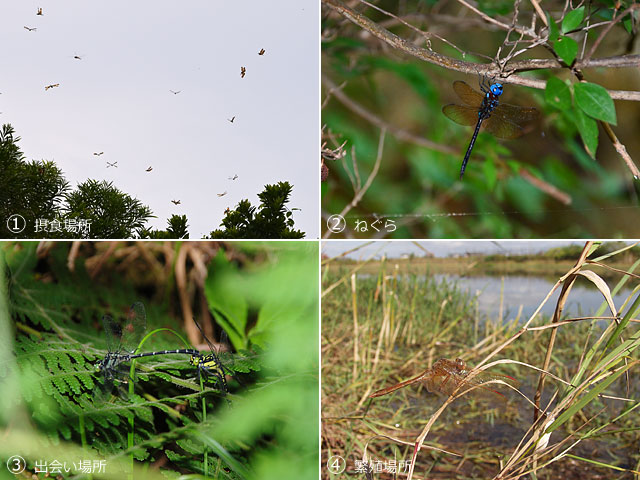
 日周活動を考える上で,押さえておかなければならない重要なことは,成虫の日周的移動です.図43は,トンボが移動する場所を,概念的に示したものです.図44は,そのうち,生殖期にある成虫の日周活動の基本となる4つのサイトの具体例です.

図43.トンボの日周活動に関わる場所移動の概念図.赤の矢印で示されている移動が,日周活動に関わる移動である.黄色の矢印は,原則一生に一度の移動である.繁殖場所,出会い場所,摂食場所,ねぐらは,それぞれが重複している種もある.
図44.トンボの日周活動に関わる場所移動の具体例.① 摂食場所:オキナワチョウトンボは樹冠の上空に集合して集団で摂食する.② マルタンヤンマのねぐらにおける休息.③ ヒメサナエは,繁殖場所でも出会いが見られるが,ねぐらにつながる林床で出会うこともある.④ オオキトンボのなわばり静止.一般にトンボが集まる水域は繁殖場所そのものである.
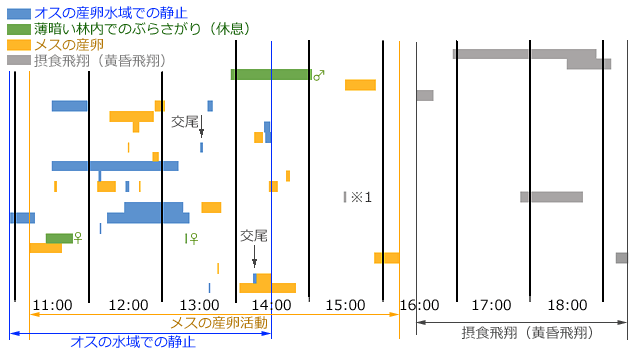
 そういった移動があることをふまえた上で,生殖期にあるトンボの日周活動パターンについて見ていくことにしましょう.上で述べたようにトンボは,日周活動を通じて移動しますので,一般にその知見は断片的にならざるを得ず,その解明には工夫が必要です.そこで,ヤブヤンマの日周活動について,過去の全23日間の断片的観察記録を重ね合わせて,その日周活動を解明してみましょう (図45).

図45.ヤブヤンマの日周活動の解明例.2009年〜2026年における,7月3日〜8月19日の間の,全23回の写真撮影記録を,4つの行動カテゴリーに分けて.それぞれの観察時刻をもとにクラフ化した.交尾はぶら下がっていたオスによるタンデム形成2回のみで,オスのぶら下がりに含めた.それぞれの観察時間は,すでに行動が起きているときから撮影を始めたり,途中で撮影を切り上げているため,実際はもっと長い.なお,図示された時刻以前に繁殖活動を行う場所を訪れたことがあり (ただし摂食飛翔が行われるとされる早朝 (杉村ら,1999) は除く),これらの活動は観察できていない.※1.上空を旋回飛翔しながらの摂食ではなく,明るい広場の低い位置を数回旋回しながら摂食飛翔した.
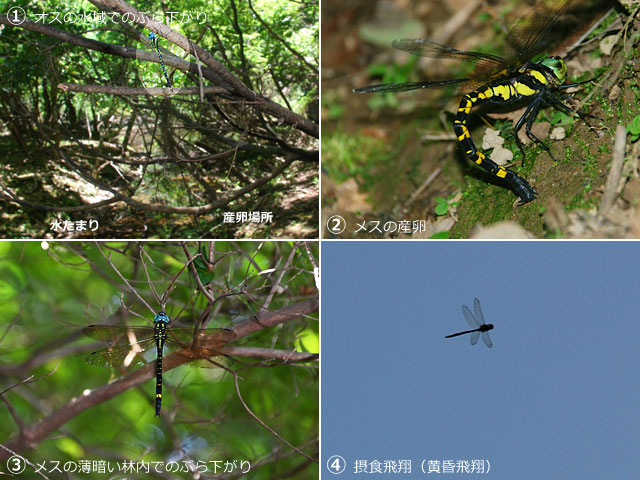
図46.ヤブヤンマのの日周活動写真.① オスの水域でのぶら下がり.産卵場所が見渡せる位置に止まっている.② メスの産卵.③ 11:26,メスが繁殖水域から離れた薄暗い林内でぶら下がって休息している.おそらく産卵意欲がないのであろう.④ 摂食飛翔 (黄昏飛翔).夕方谷間の上空で摂食飛翔を行う.データはすべて筆者が所有.
 図45,46をもとにし,一部引用を交えて,生殖期にあるヤブヤンマの日周活動をまとめてみましょう.早朝には摂食飛翔が行われていることが知られています (杉村ら,1999).午前中に繁殖場所には何度か訪れていますが,姿を見たことがありませんので活動内容は不明です.11:00ごろからオス・メスとも繁殖活動を始めます.オスはメスより少し早く産卵場所を訪れ,産卵場所がよく見通せるところに止まったり,ときどき産卵場所を飛んで探雌飛翔をしてメスを待っています.オスのそういった活動は13:30ぐらいまでがピークで,その後もちらほら水域にやってくるオスもいます.またピークを過ぎたら,林内に入って休息するオスもいるようです.

 オスより少し遅れてメスが水域に現れ産卵を始めます.産卵は16:00前後まで見られます.産卵意欲のないメスは林内で休息しているようです.16:30ぐらいから,オス・メスとも摂食飛翔 (黄昏飛翔) を始め,19:00を過ぎたあたりには終了します.おそらくその後は林内で眠るのでしょう.

 ヤブヤンマの例は,断片的な観察を重ね合わせて日周活動を推定する方法をとりました.ヤブヤンマは,一日の活動場所を1ヶ所で見渡すことができない移動を伴いますので,ある意味致し方のないことです.一方で,ほぼ1日を水辺で過ごすようなトンボであれば,継続観察することで日周活動を解明することができます.次に,2022年6月12日に行った,ムスジイトトンボの日周活動の調査結果を紹介しましょう.

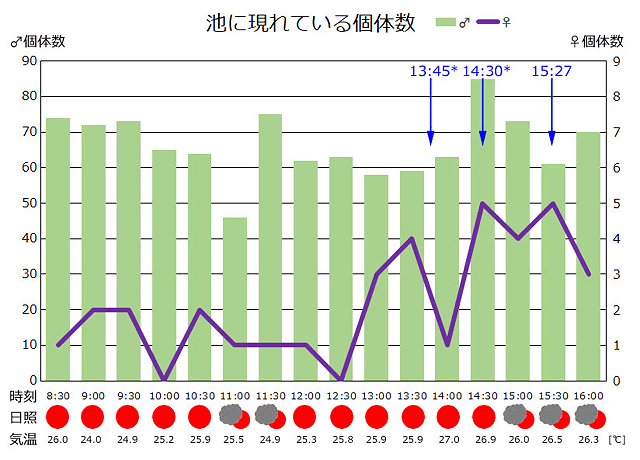
図47.生殖期にあるムスジイトトンボの日周活動調査.2022.6.12.緑の棒グラフは,決められたルートのセンサスによるオスの個体数.紫の折れ線グラフは同時に見られたメスの個体数.青矢印は潜水産卵が行われた時刻.*印は6月3日.このグラフ以前・以後の時刻の観察は行っていない.青木 (2023) より.
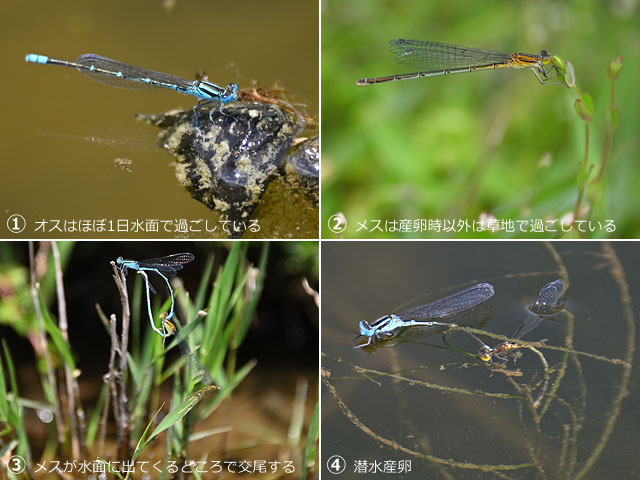
図48.生殖期にあるムスジイトトンボの日周活動写真..① オスはほぼ一日中岸近くの水面で過ごして,メスを待っている.② 産卵意欲のないメスはほとんど1日中周辺の草地などで過ごしている.③ 主に午後産卵のために水面に入ったところを,岸近くで待ちかまえていたオスに捕まり,交尾することになる.④ 産卵は少し沖の方の深みに移動して,潜水産卵を行う.
 これらの図以外に,観察したことを付け加えて,生殖期にあるムスジイトトンボの日周活動をまとめてみましょう.まず池面で活動するオスの個体数が調査時間内で大きな変化がないことから,ほとんどのオスはほぼ一日中水面で過ごし,メスが産卵に入ってくるのを待っています.

 メスは観察時間内にほぼ途切れず池面に姿を見せていますが,その絶対数は明らかにオスより少なく,多くのメスは周囲の草地などで過ごしていることが分かります.池面で活動するメスは午後の方が観察個体数が増える傾向があります.池面で活動するメスは単独で見つかることがほとんどなく (3個体のみ),ほとんどがタンデム (5個体) か交尾態 (25個体) という状況なので,産卵意欲のあるメスは午後になると水面に出てきて,生殖活動を行うようです.

 調査日の6月12日において,交尾ペア観察数とタンデム観察数の合計30ペアに比べて産卵行動観察数1ペアと,産卵の観察例が非常に少なく,産卵は目につかない場所,すなわち沖の深い部分で潜水産卵をしていると考えられます.産卵観察例は6月3日も含めてわずか3例です.そしていずれも午後に観察されています.

 最後に,モートンイトトンボの日周活動パターンを解明してみましょう.方法はヤブヤンマと同じですが,本種はオス・メスとも日中はずっと湿地に同居しておりそこから離れません.また産卵様式はメス単独による植物内産卵です.

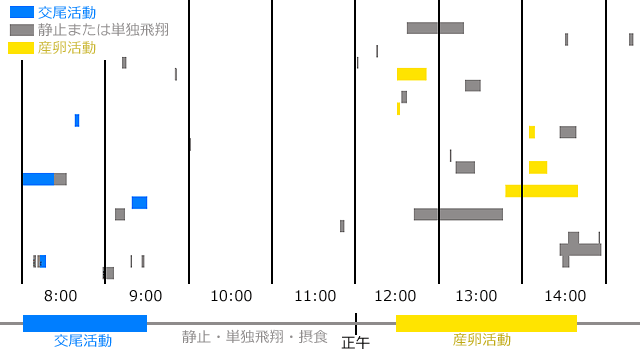
図49.生殖期にあるモートンイトトンボの日周活動.行動カテゴリーとして,交尾,産卵,単独活動 (静止・飛翔・摂食等) の3つを選んだ.写真・ビデオ撮影記録をもとにして,図45と同様の方法でグラフを作成した.最下欄の帯グラフは,Corbet (1999) の日周活動パターンを参照するために作成した.データは2010年〜2023年における5月26日〜6月29日の間のものである.
図50.生殖期にあるモートンイトトンボの日周活動の写真.① 交尾.2010.6.10., 8:15.② 産卵.2016.6.26., 14:37.
 この結果を,詳細な継続観察を行った Mizuta (1974) の研究と比較してみましょう.彼は,オスについては,麻酔したメスを細い針金に固定してオスの前に置き,オスのタンデムになろうとする反応を見る実験をしています.5時台から8時ごろまで,オスはタンデムになる反応が顕著に見られています.この論文では交尾をタンデムに含めて記録しているようなので,交尾は8時台には終了したことになります.そしてそれ以後は,オスはメスのモデルに反応しないとのことです.図49とは少し終了時間の差がありますが,交尾が早朝に行われる点は一致しています.オスの性的行動は,体内時計に支配されているのかもしれませんね.

 一方産卵は,9時台から17時台まで見られたと書かれています.かなり朝早くから産卵していることが記録されていますが,図49との違いは,10時台から12時前までおよび15時台以降の私の観察が欠落していることが原因していると思われます.また静止,摂食,単独飛翔などの行動は,オスは5時台から19時台まで,メスは8時台から19時台まで観察されていることが示されています.このあたりも図49と矛盾はないといえるでしょう.私たち研究家が特に計画的でない観察を行っても,その回数が多ければ,かなり正確にトンボの日周活動の知見が得られることが示されていると思います.

 Corbet (1999) には,トンボの日周活動パターンが類型化されており.その中でこの論文から,オスの性的活動がさかんな部分 (5時台から8時台) だけを引用して,「オスはUF型 (午前活動型) である (表1)」とカテゴライズしています.実際のモートンイトトンボの活動をメスも含めて考えると,上記のように少し違ったものになりますので,日周活動パターンを記述するときには,性による違いに注意をする必要があります.

 ここで Corbet (1999) が類型化した,日周活動のパターンを紹介しておきましょう.


パターン   記号 活動が目立つ時間帯 日本産トンボの具体例

単峰型(U) UN 正午を中心に午前から午後にかけて連続的に活動する. ムスジイトトンボ♂
(U)  UN+RS  正午前後とそれとは不連続に薄明と薄暮に活動する. ヤブヤンマ♂♀
(U)  UA 午後を中心に活動する. モートンイトトンボ♀
(U)  UF 午前を中心に活動する. モートンイトトンボ♂
二峰型(B) BFA 午前と午後に活動し途中活動の低下が見られる. −
(B)  BRS 薄明・薄暮に活動する. 前生殖期のカトリヤンマ♂♀

表1.Corbet (1999) による,日周活動のカテゴリー.少し英文を意訳している.具体例は,ここで解明した例を挙げた.カトリヤンマは栗林 (1965) による.
 さて,この項の最後に,日周活動において「活動しない」という部分について触れておきましょう.つまり,ねぐら roost で過ごすことです.ねぐらは,夜間を過ごす場所と単純に考えてしまいがちですが,暗くなったり,不適切な気温,強い風が吹いているなど,活動するのに不都合な状況のときに,特定の場所に移動して活動を止め,静止している状態をして,「ねぐらに就いている」と呼んでいます (Corbet, 1999).極端な例ですが,台風が来たときには,昼間でも,風雨を避ける場所に潜り込んでじっと耐えている,というのも「ねぐらに就いている」ということになります.

 ねぐらに就いているときの静止姿勢は,活動しているときのそれと異なっている場合があります.晩秋のアキアカネを観察に行ったとき,急激に天候が悪化し雨が降ってきたときのことでした.アキアカネは木の枝の中に潜り込み,懸垂姿勢で静止するのを観察しました.エゾトンボの静止姿勢についても,繁殖場所の湿地の近くの明るい林縁では体をやや傾けた状態でいつでも飛べるように止まるのに対し,水域から離れた薄暗い樹林の中で休息しているときには完全な懸垂姿勢になります.

図51.エゾトンボ♀の静止姿勢の違い.① 繁殖場所がすぐ近くにある林縁での,体をやや傾けた状態での静止.2020.7.26., 12:18.② 繁殖場所から遠く離れた薄暗い林の中での完全懸垂状態での静止.2024.8.3., 13:01.①②は単に静止支持物の傾きの違いによると解釈もできるが,逆にトンボがそれを選んでいると見ることもできる.②の個体は,はじめは①に近い状態で別の枝に止まっていたが,やがて止まり場所を②の枝に変えて,13:01〜14:00 (静止はそれ以後も続いていた) まで懸垂姿勢で静止していたことを確認している.
 ねぐらでは,同種・異種のトンボがある程度集団になることがあります.これはおそらく,各個体が,繁殖場所からねぐらとして好適な場所を探している間に,自然と同じ目的地にたどり着いてしまうためでしょう.観察者の我々も,特に人気種の集まるねぐらには毎年のようにそのトンボが複数やってくることを知っており,有名な観察スポットになったりします.これはとりもなおさず,トンボの目で探しているねぐらが,結果として毎年同じ場所になっていることに他なりません.

図52.オニヤンマのねぐらに複数の個体が集まっている.左下にはエゾトンボの♂も見える.
 以上は昼間に活動を休止してねぐらに集まってくる例ですが,実際に夜間にねぐらに集合しているトンボを観察したことがあります.ヒヌマイトトンボです.これは 二宗 (1997) で報告されましたが,筆者も参加しました.夜間にオスとメスが混じって集団で睡眠しているのです.この報告には次のような記述があります.「懐中電灯で照らしても逃げないし,手で捕まえてもじっとしている.そっと戻してもそのまま止まっている.ぐっすりと眠っているようであった.捕食者であるアオモンイトトンボもヒヌマイトトンボと一緒に寝ていた.」

図53.ヒヌマイトトンボのねぐら (ヨシ原の縁) における集団睡眠.1996.7.20., 21:00.
 ヒヌマイトトンボの日周活動は,近縁のモートンイトトンボとよく似ています.早朝から午前にかけてだけ交尾を行うので,オス・メスが集合していることは都合がよいと思われます.捕食者も一緒に眠っているという点は,笑えませんが,これも効果的です.
参考文献
青木典司,2023.ムスジイトトンボの観察.Gracile (82): 1-7..
東 和敬・生方秀紀・椿 宜高,1987.トンボの繁殖システムと社会構造.東海大学出版会.東京.
東 輝弥・青木典司,2025.兵庫のトンボ −分布記録と生態観察−.680pp., 自刊.
Corbet, P.S., 1962. A Biology of Dragonflies. H. F. & G. Witherby ltd., GB.
Corbet, P. S., 1999. "Dragonflies Behavior and Ecology of Odonata". Cornell Universitiy Press. New York.
栗林 田,1965.カトリヤンマ成虫の生態−飛翔活動と照度−.Tombo 8(1/4): 10-14.
May, L.M., 1976. Thermoregulation and Adaptation to Temperature in Dragonflies (Odonata: Anisoptera). Ecological Monographs, 46:1-32.
Miller,P.L., 1962. Spiracle Control in Adult Dragonflies (Odonata). Journal of Experimental Biology (39/4):513-535.
Mizuta, R., 1974. Ecological and behavioral isolation among Mortonagrion selenion Ris, Ceriagrion melanurum Selys, and Copera annulata (Selys) (Zygoptera: Coenagrionidae, Platycnemididae). Odonatologica, 3(4): 231-239.
二宗誠治,1997.兵庫トンボ研究会調査会記録 1996年 第2回.SympetrumHyogo, (4):18-24.
尾園 暁・川島逸郎・二橋 亮,2022.ネイチャーガイド 日本のトンボ.電子版.文一総合出版,東京.
尾園 暁・川島逸郎・二橋 亮,2012.ネイチャーガイド 日本のトンボ.文一総合出版,東京.
*Sternberg, K., 1995. Experimentelle Erzeugung androchromer Weibehen durch Einwirkung hoher Temperaturen bei Arten der Lobellen-Gattung Aeshna (Anisoptera: Aeshnidae). Entmol. gener 20(1/2):37-42. (With Engl. s.).
Robertson, H.M., 1984. Pruinosity in Odonata reflects U.V. Notulae odonatologicae, 2:68-69.
杉村光俊・石田昇三・小島圭三・石田勝義・青木典司,1999.原色日本トンボ幼虫成虫大図鑑.北海道大学図書刊行会.札幌.
Tillyard, R. J., 1917. The biology of Odonata (Odonata or Paraneuroptera). Cambridge University Press. London.
Ubukata, H., 1981. Survivorship curve and annual fluctuation in the size of emerging population of Cordullia aenea amurensis Selys (Odonata: Corduliidae). 日本生態学会誌, 31:335-346.
上田哲行,1993.山へ上るアキアカネ上らないアキアカネ.アキアカネの生活史における諸問題−1.インセクタリウム 30(9月号):4-11.
Uéda, T, 1989. Sexual maturation, body color changes and increase of body weight in a summer diapause population of the damselfly Lestes sponsa (Hansemann) (Zygoptera: Lestidae). Odonatologica, 18(1): 75-87.